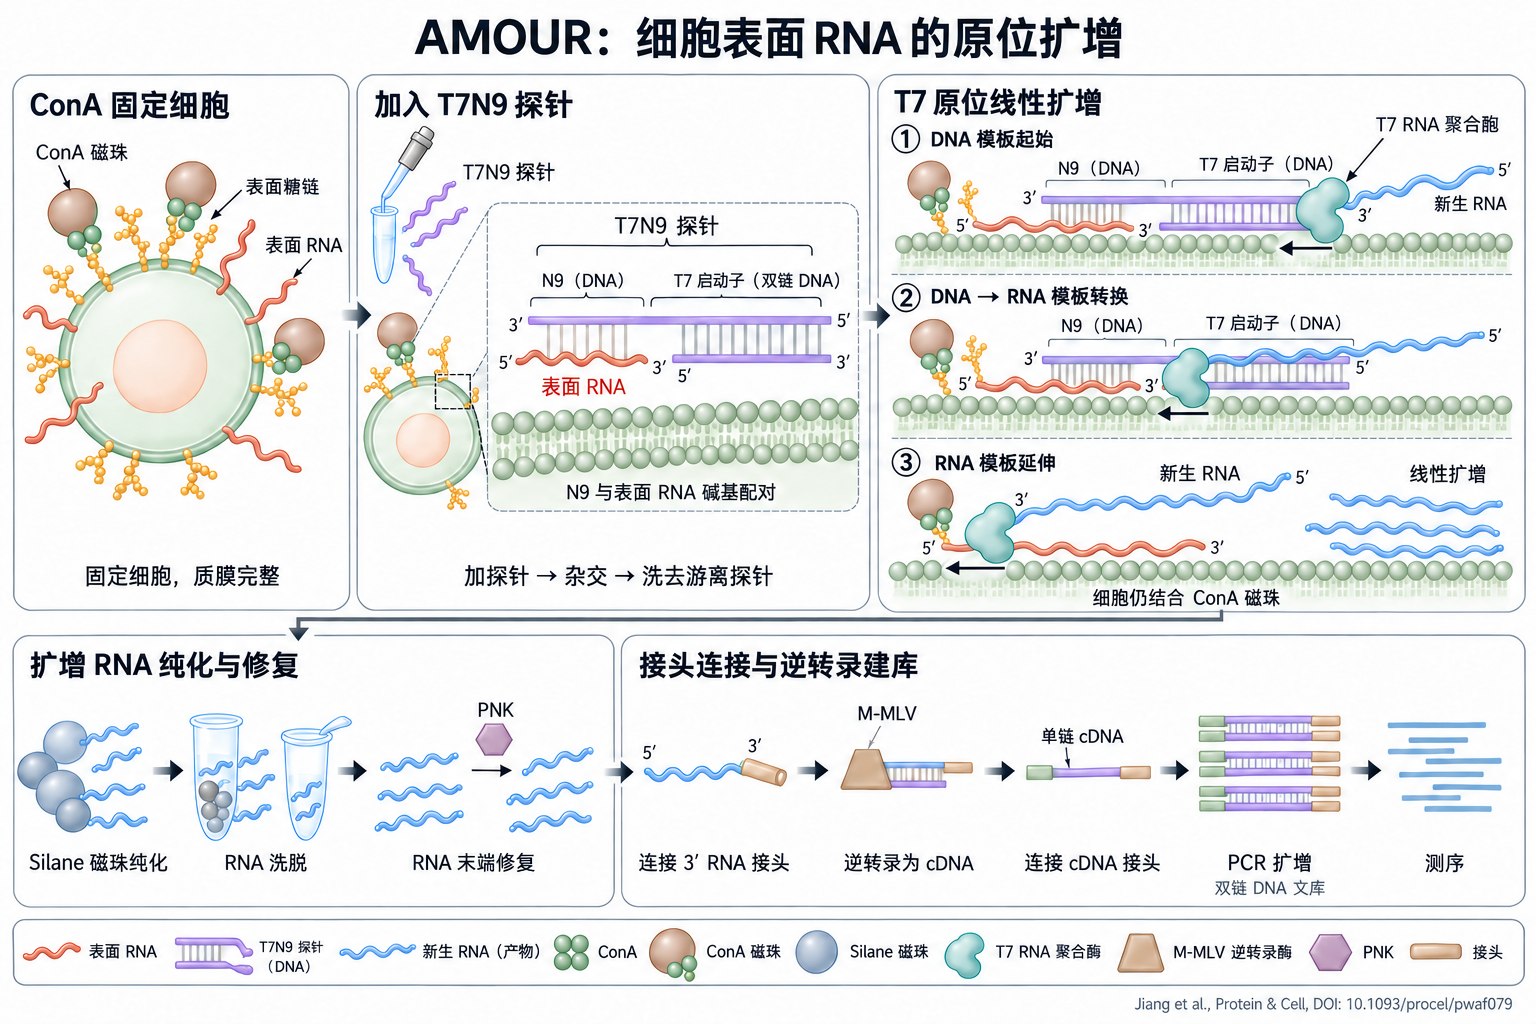
AMOUR(in-situ amplification of outer membrane surface RNA)的核心,是在保持质膜完整的前提下,将细胞表面 RNA 的序列信息转换为可测序的双链 DNA。细胞经固定但不透化,再通过刀豆凝集素(ConA)磁珠结合表面糖链,将整个细胞固定下来,便于洗涤和更换反应液。随后加入 T7N9 探针,使探针与细胞外侧可接触的 RNA 杂交,洗去游离探针,再加入 T7 RNA 聚合酶(T7 RNAP)和核苷三磷酸(NTP),进行原位扩增。[1]
探针结构与原位扩增
T7N9 探针是部分双链 DNA:长链含 T7 启动子区和与之连续的 9 个随机碱基(N9),短链仅与启动子区互补;退火后,启动子区形成双链,N9 保持单链突出,可与表面 RNA 的互补区段配对。长链自左向右为 3′→5′,左侧是 N9,右侧是启动子区;短链位于右下方,自左向右为 5′→3′。T7 RNAP 由右向左转录,以这条不含 N9 的短链 DNA 为模板,含 N9 的长链为非模板链。
T7 RNAP 首先结合双链 T7 启动子,使起始位点附近局部解链,形成转录泡(transcription bubble),DNA 模板链进入活性中心。T7 RNAP 以从头合成(de novo)的方式起始,不依赖预先存在的核酸引物:起始 NTP 提供 3′-OH,聚合酶催化后续 NTP 与之形成磷酸二酯键,使新生 RNA 按 5′→3′ 方向延长。进入延伸阶段后,T7 RNAP 沿短链 DNA 模板的 3′→5′ 方向读取;到达 DNA 模板末端附近时,探针与表面 RNA 的杂交结构为模板转换提供衔接,使聚合酶转而以表面 RNA 为模板继续合成 RNA。
模板转换后,T7 RNAP 沿表面 RNA 的 3′→5′ 方向读取,继续按 5′→3′ 方向延伸新生 RNA,生成与所复制表面 RNA 区段互补的反义 RNA。这个过程利用了 T7 RNAP 除 DNA 依赖的 RNA 聚合酶活性之外,还能够以 RNA 为模板合成 RNA 的能力。同一表面 RNA 可以参与多轮复制,形成多个 RNA 产物;扩增产物的 5′ 端来自起始时转录的探针序列,后续区段则来自表面 RNA 的互补拷贝。这里的线性扩增区别于 PCR 中产物继续充当模板的指数扩增,因此能在较大程度上保留原始表面 RNA 的相对丰度。[1]
逆转录与测序建库
扩增结束后,用 Silane 磁珠纯化并洗脱 RNA。RNA 经多核苷酸激酶(PNK)末端修复后,利用 T4 RNA 连接酶 2 的截短 KQ 变体连接预腺苷化的 3′ 接头。随后,使接头特异性的逆转录引物与接头配对,为 M-MLV 逆转录酶提供可延伸的 3′-OH。M-MLV 以扩增 RNA 为模板,催化 dNTP 聚合,按 5′→3′ 方向合成互补 DNA(cDNA)。[2]
得到的 cDNA 再由 T4 RNA 连接酶 1 连接 cDNA 接头,随后通过 PCR 形成双链 DNA 测序文库。两端接头提供扩增和测序所需的引物结合序列,测序后根据文库方向,将来自反义 RNA 的 reads 对应回原始表面 RNA。[2]
参考资料
- Jiang X, Xu C, Yang E, et al. Deciphering the RNA landscapes on mammalian cell surfaces. Protein & Cell, 2026, 17(2): 113–126. DOI: 10.1093/procel/pwaf079。原位扩增见 Fig. 2A 及正文对应说明。
- 同文方法材料,Detailed flowchart of the AMOUR method;研究数据中的建库说明(GEO:GSM8001278)。建库顺序为 RNA 末端修复、3′ 接头连接、逆转录、cDNA 接头连接与 PCR。
本文由 GPT-6.1 sol 整理撰写。